Stoff · ThemaAmmoniak und Ammoniogenese
Erschienen05/2026
Ammoniak und Ammoniogenese: Wenn Proteinabbau problematisch wird
Ammoniogenese erklärt: Wie Bakterien Ammoniak produzieren, warum Proteinabbau problematisch wird und therapeutische Ansätze basierend auf Metabolomik.
Von Emma Voss ·
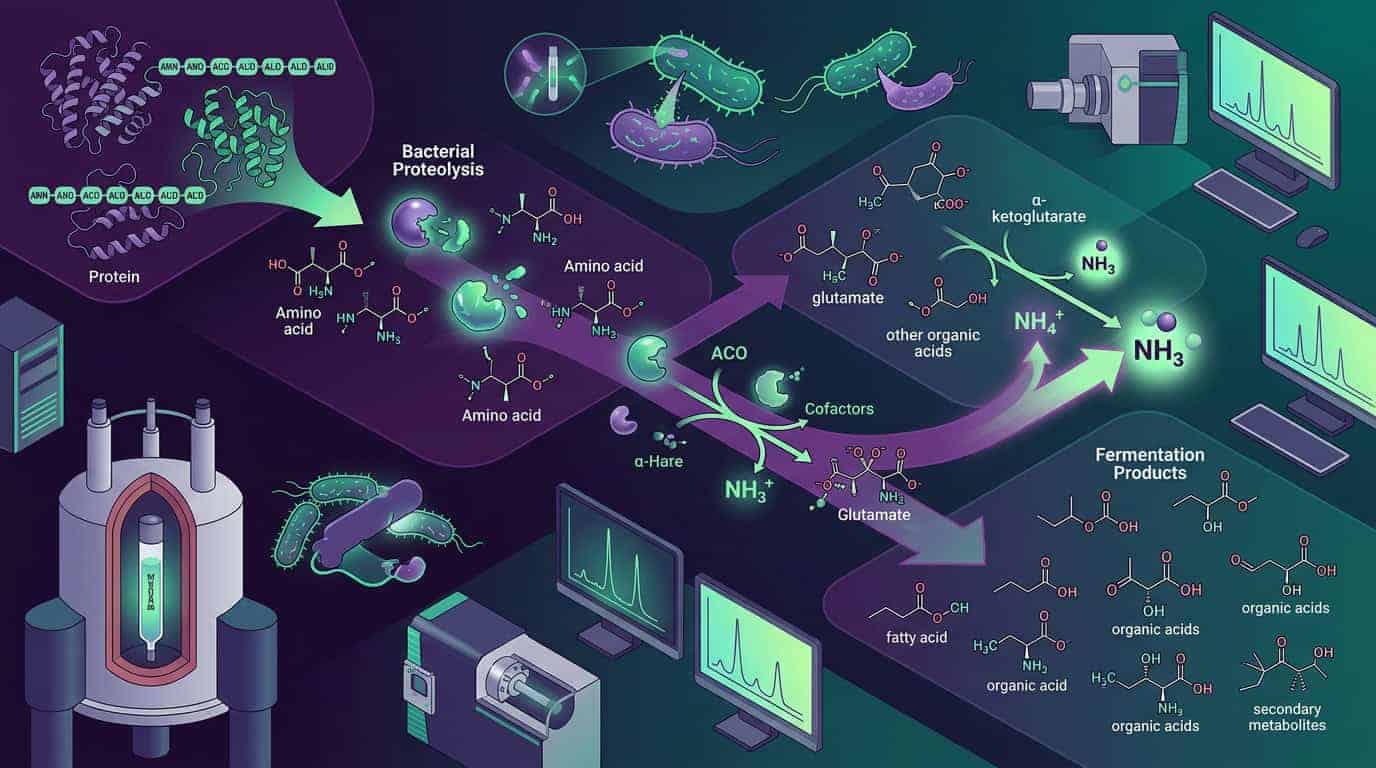
Man unterschätzt systematisch, wie viele verschiedene Quellen Ammoniak im Kolon erzeugen und wie wenig man über die Konsequenzen dieser Vielfalt tatsächlich versteht. Ammoniogenese ist nicht ein einziger Prozess, sondern mehrere parallele mikrobielle Stoffwechselwege, die unterschiedlichen Regulatoren folgen und teilweise gegensätzliche Konsequenzen für den Wirtsorganismus haben.
Woher kommt das Ammoniak im Darm?
Zwei Mechanismen dominieren die Ammoniakproduktion im menschlichen Kolon. Der erste ist die bakterielle Ureaseaktivität. Die Leber produziert täglich Harnstoff als das Endprodukt des hepatischen Stickstoffwechsels. Ein großer Anteil dieses Harnstoffs wird nicht nur über die Nieren ausgeschieden, sondern gelangt auch ins Kolon, wo spezialisierte Bakterien das Enzym Urease besitzen. Dieses Enzym katalysiert die Hydrolyse von Harnstoff zu Ammoniak und Kohlendioxid. Diese Reaktion ist ausschließlich bakterieller Herkunft. Der menschliche Organismus verfügt über keine funktionalen Ureasegenе, das ist eine enzymatische Fähigkeit, die wir vollständig an unsere mikrobielle Community delegiert haben.
Der zweite Mechanismus ist die proteolytische Fermentation von Aminosäuren und Peptiden. Wenn Kohlenhydrate im proximalen Kolon aufgebraucht sind oder wenn große Proteinmengen ins Kolon gelangen, schalten Bakterien ihre metabolische Strategie um. Sie nutzen Glutaminase, spezifische Deaminasen und andere proteolytische Enzyme, um Aminosäuren zu deaminieren. Dabei entsteht Ammoniak als unvermeidliches Stickstoff-Koprodukt dieser Reaktionen. Glutamin und Glutamat werden besonders schnell abgebaut, ebenso Serin, Lysin und Asparagin. Dieser proteolytische Weg verstärkt sich bei hoher Proteinaufnahme, bei niedriger Ballaststoffkonzentration und bei Dysbiose, wenn proteolytische Taxa wie Klebsiella, Proteus oder Morganella dominant werden.
Welche Bakterien produzieren Ammoniak?
Die ammoniakproduzierenden Bakterien sind keine zufällige Auswahl. Proteobakterien wie Klebsiella pneumoniae und Proteus mirabilis tragen das Gen ureC, das die urease-katalytische Untereinheit codiert. Viele Firmicutes tragen das Gen ureA. Escherichia coli kann über spezifische Deaminasen wie Glutamat-Decarboxylase-Systeme (gadA und gadB) Ammoniak produzieren. Diese Taxa sind opportunistische Pathobionten, die bei Dysbiose expandieren und die Ammoniakproduktion dramatisch erhöhen können. Im Gegensatz dazu sind etablierte Kommensalen wie Faecalibacterium prausnitzii und die meisten Bacteroides-Arten schwache Ammoniakproduzenten oder nutzen das produzierte Ammoniak unmittelbar für ihre eigene Proteinsynthese.
Der metabolische Verbleib von Ammoniak
Ammoniakherkunft ist nur die halbe Geschichte. Der metabolische Verbleib entscheidet über physiologische Harmlosigkeit oder toxische Konsequenzen. Ammoniak folgt nach seiner Erzeugung drei verschiedenen biochemischen Wegen. Der erste ist die unmittelbare Rückaufnahme durch die Mikrobiota selbst. Ein großer Anteil des produzierten Ammoniaks wird von Bakterien zur Proteinsynthese und zum Stickstoff-Einbau in Nukleotide und andere Biomoleküle genutzt. Das ist metabolisch sinnvoll, die Mikrobiota nutzt ihren lokal produzierten Stickstoff selbst und schließt damit einen lokalen Kreislauf, der die Ammoniakkonzentration begrenzt.
Der zweite Weg ist die Absorption durch die Kolonepithelien. Ammoniak wird ins Blutplasma aufgenommen und zur Leber transportiert. Dort tritt es in den Harnstoffzyklus ein und wird entweder wieder zu Harnstoff konvertiert oder trägt zum körperweiten Stickstoff-Pool bei. Der dritte Weg ist die fäkale Ausscheidung, wenn die lokale Ammoniakkonzentration im Lumen zu hoch wird und nicht vollständig reabsorbiert werden kann.
Was in konventionellen Lehrbüchern fehlt, ist die chemische Pufferfunktion von Ammoniak im Kolonlumen. Da Kurzkettige Fettsäuren wie Butyrat und Propionat starke Säuren sind, die einen sauren pH erzeugen, neutralisiert Ammoniak diese H+-Ionen durch Protonenbindung und trägt aktiv zur Aufrechterhaltung eines schwach alkalischen Luminalumgebung bei. Das ist kein Nebeneffekt, sondern eine regulatorische Puffer-Funktion im Redoxmilieu des Kolons. Ohne diese Ammoniakproduktion würde der intrakolonale pH durch SCFA-Akkumulation zu sauer werden.
Leberkrankheit und Hyperammonämie
Diese normale Homöostase der Ammoniakkonzentration bricht zusammen, wenn die Hepatofunktion versagt. Bei chronischen Lebererkrankungen, bei akuten Leberverletzungen und bei genetischen Ureazyklusdefekten kann die Leber das vom Intestinaltrakt stammende Ammoniak nicht mehr effizient verarbeiten. Serammoniak zirkuliert systemisch in deutlich erhöhten Konzentrationen. Höhere Ammoniakspiegel korrelieren direkt mit neurologischen Schäden. Die Hyperammonämie führt zur hepatischen Enzephalopathie, einem Zustand, bei dem Ammoniak die Blut-Hirn-Schranke überwindet und die Synthese von Neurotransmittern wie Glutamat und Acetylcholin stört.
Mikrobiom-Engineering als therapeutischer Ansatz
Hier zeigt sich eine faszinierende experimentelle Observation aus der mikrobiellen Metabolomik. Wenn man das Mikrobiom mit Bakterienkonsortien besiedelt, die minimal Ureasegenе tragen, sinkt nicht nur die fäkale Ammoniakkonzentration, sondern auch das zirkulierende Serammoniak. Das wurde wissenschaftlich bewiesen, als Forscher das depletierte Mikrobiom von Mäusen mit dem Altered Schaedler Flora Konsortium impften, das aus nur acht definierten Stämmen mit minimaler Ureaseaktivität besteht. Die resultierende Reduktion der Ammoniakproduktion milderte messbar die Morbidität und Mortalität in akuten Leberversagensmodellen. Das ist keine theoretische Spekulation, sondern experimentelle Metabolomik mit direktem therapeutischem Effekt. Die impften Tiere zeigten nicht nur niedrigere Fäkal- und Serammoniak-Spiegel, sondern auch weniger neurobehaviorale Defizite und höhere Überlebensraten nach experimenteller Leberschädigung.
Ammoniogenese als Redox-Balance-Phänomen
Was metabolomische Analysen offenbaren, ist dass Ammoniogenese und Butyratproduktion miteinander in ständiger Redox-Konkurrenz stehen. Proteolytische Fermentation erzeugt Ammoniak, Indole und Phenole sowie Schwefelwasserstoff. Saccharolytische Fermentation erzeugt kurzkettige Fettsäuren wie Butyrat, Propionat und Acetat. Diese beiden Prozesse sind nicht unabhängig voneinander. Sie teilen sich dieselben Elektronenakzeptoren, werden durch das gleiche Substratangebot reguliert und beeinflussen ihre gegenseitigen Redox-Potenziale auf fundamentale Weise.
Eine niedrige Ballaststoffkonzentration in der Ernährung verschiebt die metabolische Balance zugunsten der Proteolytik und damit der Ammoniakproduktion. Eine erhöhte Verfügbarkeit von resistenter Stärke und Inulin schiebt die Balance zurück zu SCFA-Produktion und zur Suppression proteolytischer Taxa. Das ist kein biologisches Paradoxon, sondern ein Substrat-limitiertes System, das thermodynamischen Gesetzen und metabolischer Ökonomie folgt. Welcher Weg dominiert, bestimmt das verfügbare Substrat.
Therapeutische Perspektive
Wenn man Ammoniogenese in praktischer Anwendung reduzieren will, ist die sinnvolle Intervention nicht der direkte Versuch, die Ammoniogenese-Enzyme zu blockieren. Das macht biologisch wenig Sinn und führt zu unerwünschten Nebenwirkungen. Die echte metabolomische Intervention liegt in der gezielten Modulation des Substratangebots. Man gestaltet die Ernährung so, dass Bakterien lieber Kohlenhydrate gären als Proteine zu katabolisieren. Das ist precision metabolomics im eigentlichen Sinne. Erhöhter Ballaststoffkonsum und gezielt ausgewählte präbiotische Stoffe verschieben das metabolische Muster weg von Ammoniogenese hin zu SCFA-Produktion. Die Reduktion der Ammoniakkonzentration folgt nicht aus Enzyminhibition, sondern aus einer Neuausrichtung der gesamten mikrobiellen Gemeinschaft.
Quellen
Shen T-C, Wu GD, et al. (2015). Engineering the Gut Microbiota to Treat Hyperammonemia. Journal of Clinical Investigation, 125(9), 3585-3597. https://doi.org/10.1172/JCI79214
Diaz Heijtz R, et al. (2011). Normal Gut Microbiota Modulates Brain Development and Behavior. Proceedings of the National Academy of Sciences, 108(7), 3047-3052. https://doi.org/10.1073/pnas.1010529108
HinweisDie Inhalte auf dieser Seite sind keine medizinische Beratung. Bitte sprechen Sie gesundheitliche Fragen mit Ihrer Ärztin oder Ihrem Arzt ab.